

近年来抗衰老赛道一路狂奔,产业整体进入快速增长周期。据Research Nester统计,抗衰老药物市场规模2025年约为522.7亿美元,预计2035年底将达到1018.7亿美元,2026-2035年预测期内复合年增长率达6.9%。
市场蓬勃发展,更多天然的抗衰活性成分受到关注。其中,源自特定葡萄籽提取的天然成分PCC1(原花青素C1,Procyanidin C1),凭借在衰老细胞清除方向的突破性能力,持续获得学界与业界关注。
实际上,梳理公开科研成果不难发现,关于PCC1的研究远不止于抗衰老。历经近三十年全球多国科研团队的持续探索,PCC1在抗氧化、免疫调节、心血管保护等多个领域的活性价值被多次验证,相关研究成果陆续登陆《Phytomedicine》《Food Chemistry》《Acta Pharmacologica Sinica》等权威期刊,成为大健康领域极具转化潜力的明星天然成分之一。
全球科研团队持续关注PCC1的抗衰潜力
PCC1的化学身份并不神秘。它是原花青素家族的一员,是一种天然存在的三聚原花青素,从特定葡萄籽提取物中发现。
与NAD+、麦角硫因、PQQ等抗衰成分通过影响细胞能量代谢、抗氧化损伤的机制不同,PCC1与D+Q等成分同属衰老细胞清除剂(Senolytic),其科研价值在于可选择性地清除衰老细胞,而不损伤正常细胞。
科学研究表明,细胞衰老是机体衰老进程的重要驱动因素之一[1]。随着机体老化,一部分细胞会停止分裂但未死亡,仍保持代谢活性。这些“不干活、也不退场”的细胞持续留在组织中,也被称为“僵尸细胞”。其通过分泌大量的炎症因子、蛋白酶和生长因子(统称为衰老相关分泌表型,SASP)对周围组织产生有害影响,形成慢性炎症微环境,加速组织功能衰退。
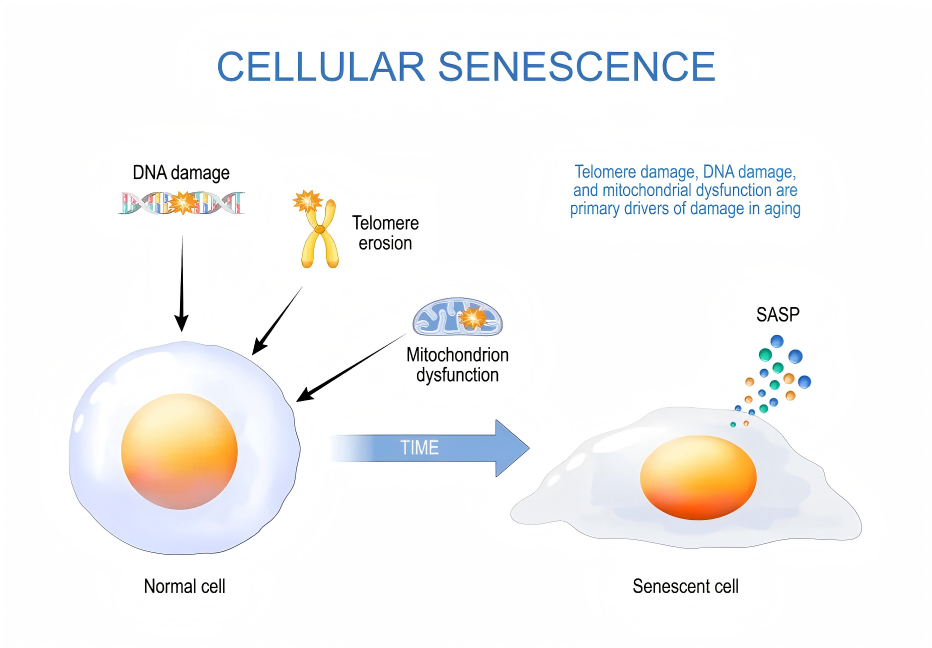
▲细胞衰老示意图:DNA损伤、端粒磨损、线粒体功能障碍随时间累积,诱导正常细胞转变为可释放SASP的衰老细胞
能够选择性清除衰老细胞的抗衰机制,被国际学界认为是延缓衰老的重要方向。早在2015年,《Aging cell》上的研究首次提出并验证了“小分子衰老细胞清除剂(senolytics)”的概念,证明可以通过药物选择性清除衰老细胞,从而改善健康寿命[2]。
2021年,一项发表在权威期刊上的研究成果,首次系统证实了PCC1的衰老细胞清除活性[3]。
此后,国内外科研团队持续跟进验证,相关成果陆续发表于《Nature communications》《PNAS》《NPJ Aging》等国际高水平期刊,覆盖视网膜结构与功能衰退、抗器官纤维化、造血免疫系统衰老、血管衰老多个领域,进一步丰富了PCC1多器官抗衰的证据链。
其中两项代表性研究成果形成了关键支撑:一项聚焦眼部抗衰老领域,2024年中山大学中山眼科中心团队在《PNAS》发表研究,表明 PCC1可通过衰老细胞清除缓解自然衰老小鼠的视网膜衰退[4];另一项同样来自该团队,证实PCC1可以诱导衰老粒细胞与髓系细胞凋亡,重建造血免疫稳态,为免疫衰老的机制研究提供了细胞层级的支撑[5]。
全球多国科研团队接力,持续挖掘PCC1多维度价值
此外,PCC1的科研价值并不局限于抗衰老领域。在2021年其选择性清除衰老细胞活性被系统证实之前,全球多国科研团队针对PCC1开展了抗氧化、抗糖化、抗病毒、免疫调节、抗过敏、代谢调控、神经保护等多个方向的基础研究积累。
回溯PCC1的研究脉络,前期全球科研团队主要聚焦PCC1的基础活性,随着研究深入,其在机体多维功能调节方面的科研价值逐步被揭示。
1.基础活性的研究价值:抗氧化、抗糖化、抗病毒
公开文献显示,PCC1的研究最早可追溯至1998年。埃及开罗国家研究中心药学部的团队在《Phytomedicine》上报道了PCC1在体外具有一定的抗HIV活性。这是PCC1生物活性研究的起点,首次将其引入抗病毒研究领域[6]。
之后的几年里相关研究快速铺开:2002年,日本明治制果株式会社功能食品研发实验室证实PCC1是巧克力和可可的主要多酚成分,能够保护低密度脂蛋白(LDL)免受体外氧化损伤,将PCC1的研究从药用植物拓展至日常食品[7];2003年,比利时安特卫普大学制药科学系研究发现,PCC1是DPPH自由基和羟基自由基的良好清除剂,同时可强力抑制脂质过氧化和补体系统经典途径,确立了PCC1在抗氧化领域的学术地位[8];2004年,日本富山县生物技术中心系统合成四种表儿茶素类原花青素三聚体。研究证实三聚体抗糖化能力高于单体,不仅首次完成PCC1的系统化学合成,也把PCC1的功能研究拓展到抗糖化方向[9]。
这一阶段约十年间,PCC1主要被视作一种具有抗氧化、抗病毒潜力的天然多酚化合物,默默地在各大学术期刊中积累着它的“履历”。
2.机体多维功能调节的探索与研究:免疫、过敏、心血管、代谢
2008年至2020年,PCC1相关研究主力由欧美转向东亚,日本、韩国与中国成为核心研究力量,研究层级也由体外实验推进到动物模型,其多靶点特性逐步得到揭示。
免疫调节与抗炎:PCC1对免疫系统呈现双向调控特性,美国蒙大拿州立大学2008年的研究证实其具备免疫激活作用[10],韩国原子能研究院2013年的两项独立研究分别验证了其既可抑制巨噬细胞炎症反应[11],也可激活巨噬细胞并促进免疫细胞分化,从而调节免疫功能[12]。
心血管保护:多个独立研究[13,14,15]证实PCC1可通过超极化和PI3K/Akt途径促进血管内皮NO生成,最终实现血管舒张,从细胞层面到离体血管环模型的完整证据链验证了其内皮保护功能。
抗过敏:在细胞与分子双重层面得到验证,既可以剂量依赖性抑制肥大细胞脱颗粒,也可直接结合花生过敏原蛋白Ara h 2,显著降低其与IgE的结合能力[16,17]。
抗病毒(抗HIV):后续研究进一步将PCC1应用于HIV的“潜伏库激活”策略,通过联合其他活性成分协同激活潜伏病毒,服务于“激活并杀灭”的HIV根治方案[18,19]。
糖代谢与能量代谢调控:形成完整功能链条,从延缓糖吸收降血糖、保护胰岛β细胞促进胰岛素分泌,到增强胰岛素敏感性,同时单次口服即可促进小鼠能量消耗,具备体重管理潜力[20,21,22]。
神经保护:2019年韩国嘉泉大学韩医学院首次证实PCC1可有效防止海马神经元细胞凋亡性死亡,填补了该方向的研究空白[23]。
这一阶段,PCC1的研究范围大幅拓展,可以说,在2021年之前,PCC1已经是一个“多面手”,在抗氧化、抗炎、心血管保护、神经保护等多个领域展现出潜力,也为后续在抗衰老方向的突破埋下了伏笔。
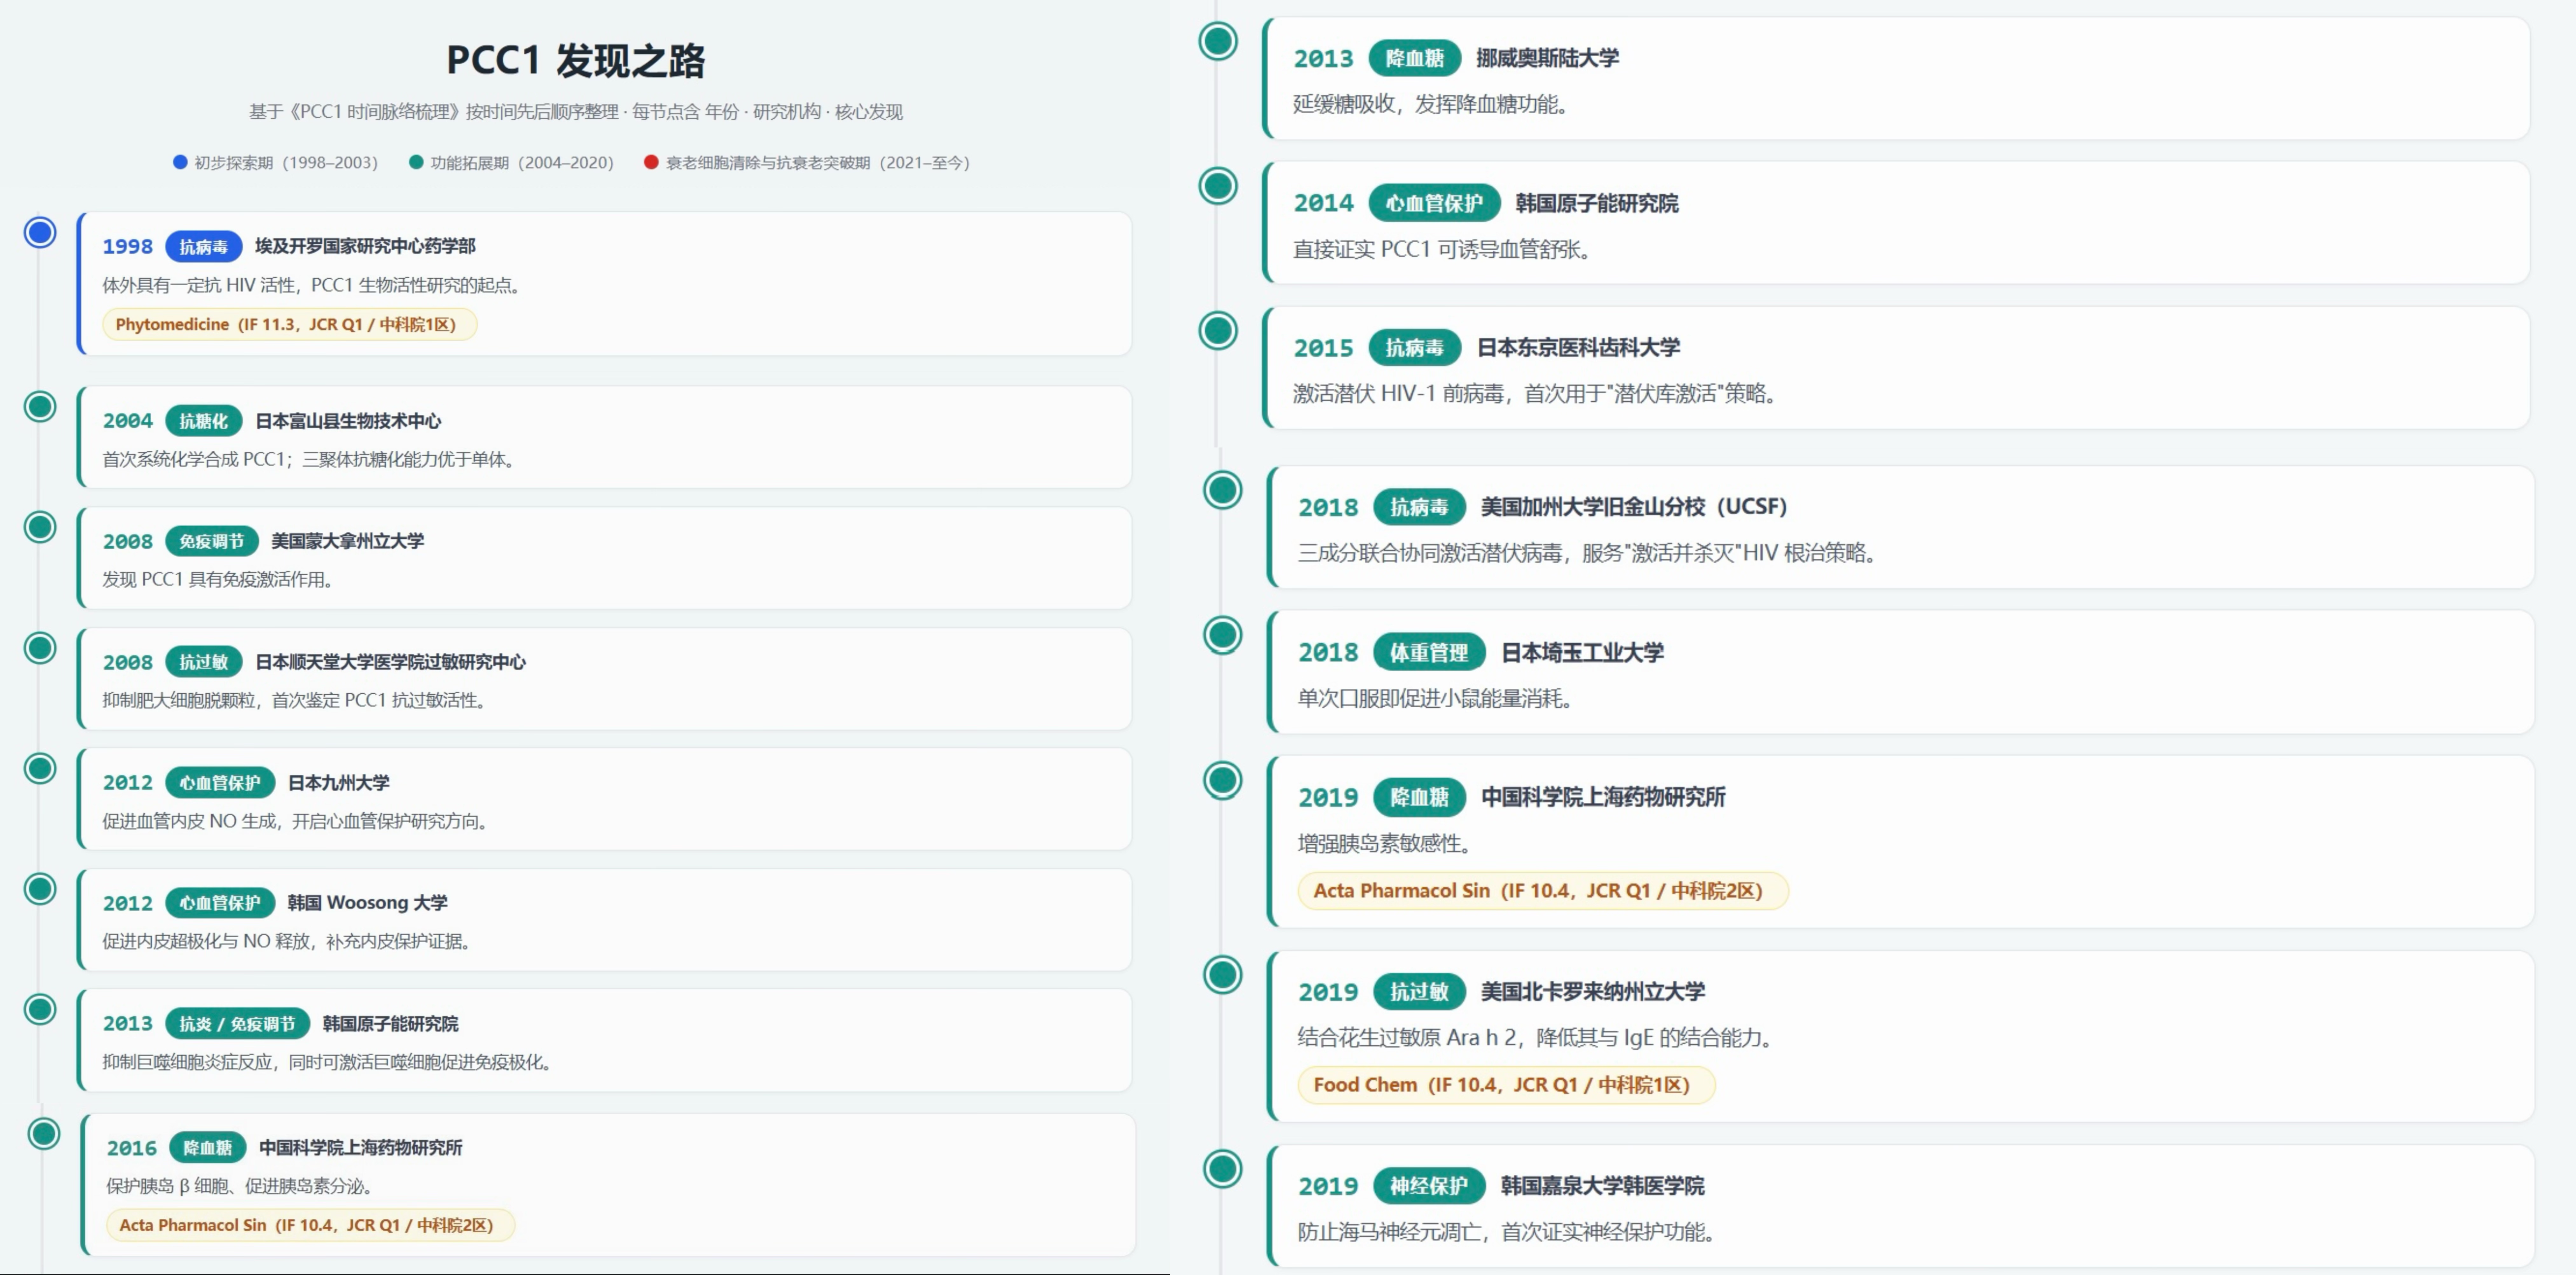
▲初步探索期&功能拓展期研究成果时间轴
总的来说,纵观其近三十年的研究脉络,PCC1的科研体系呈现出由基础活性到功能、由体外到体内、由单一靶点到多系统调控的清晰演进逻辑。
PCC1这一天然成分的走红,并非依靠单篇高分论文的短期热度,而是全球多国科研团队在多个研究方向上的长期积累和反复验证。未来,随着机制研究的深入,以PCC1为代表的“衰老细胞清除剂”有望加速从实验室走向应用端,为大众健康管理提供更多科学选择。
参考文献:
[1] LÓPEZ-OTÍN C, Blasco M A, Partridge L, et al. Hallmarks of aging: An expanding universe[J]. Cell, 2023.
[2] Zhu Y,et al.The Achilles' heel of senescent cells: fromtranscriptome to senolytic drugs.Aging cell,2015.
[3] Xu Q,et al. The flavonoid procyanidin C1 has senotherapeutic activity and increases lifespan in mice. Nature Metabolism, 2021.
[4] Liu Y, et al. Senolytic and senomorphic agent procyanidin C1 alleviates structural and functional decline in the aged retina. PNAS, 2024.
[5] Liu X,et al.Single-cell profiling unveils a geroprotective role of Procyanidin C1 in hematopoietic immune system via senolytic and senomorphic effects. npj Aging, 2025.
[6] Shahat A A, et al.Anti-HIV activity of flavonoids and proanthocyanidins from Crataegus sinaica.Phytomedicine, 1998.
[7] Osakabe N, Yasuda A, Natsume M, et al.Catechins and their oligomers linked by C4→C8 bonds are major cacao polyphenols and protect low-density lipoprotein from oxidation in vitro [J]. Experimental Biology and Medicine, 2002.
[8] Cos P, Hermans N, Calomme M, et al.Comparative study of eight well-known polyphenolic antioxidants [J]. Journal of Pharmacy and Pharmacology, 2003.
[9] Saito A, Doi Y, Tanaka A, et al.Systematic synthesis of four epicatechin series procyanidin trimers and their inhibitory activity on the Maillard reaction and antioxidant activity [J]. Bioorganic & Medicinal Chemistry, 2004.
[10] Holderness J, Hedges J F, Daughenbaugh K, et al. Response of gammadelta T Cells to plant-derived tannins [J]. Critical Reviews in Immunology, 2008.
[11] Byun E B, Sung N Y, Byun E H, et al. The procyanidin trimer C1 inhibits LPS-induced MAPK and NF-κB signaling through TLR4 in macrophages [J]. International Immunopharmacology, 2013.
[12] Sung N Y, Yang M S, Song D S, et al. The procyanidin trimer C1 induces macrophage activation via NF-κB and MAPK pathways, leading to Th1 polarization in murine splenocytes [J]. European Journal of Pharmacology, 2013.
[13] Byun E B, Ishikawa T, Suyama A, et al. A procyanidin trimer, C1, promotes NO production in rat aortic endothelial cells via both hyperpolarization and PI3K/Akt pathways [J].European Journal of Pharmacology, 2012;
[14] Byun M W,Effect of procyanidin C1 on nitric oxide production and hyperpolarization through Ca²⁺-dependent pathway in endothelial cells [J]. Journal of Medicinal Food, 2012.
[15] Byun E B, Sung N Y, Yang M S, et al. Procyanidin C1 causes vasorelaxation through activation of the endothelial NO/cGMP pathway in thoracic aortic rings [J]. Journal of Medicinal Food, 2014.
[16] Nakano N, Nishiyama C, Tokura T, et al.Procyanidin C1 from apple extracts inhibits Fc epsilon RI-mediated mast cell activation [J]. International Archives of Allergy and Immunology, 2008.
[17] Plundrich N J, Cook B T, Maleki S J, et al.Binding of peanut allergen Ara h 2 with Vaccinium fruit polyphenols [J]. Food Chemistry, 2019.
[18] Hori T, Barnor J, Nguyen Huu T, et al. Procyanidin trimer C1 derived from Theobroma cacao reactivates latent human immunodeficiency virus type 1 provirus [J]. Biochemical and Biophysical Research Communications, 2015.
[19] Cary D C, Peterlin B M. Procyanidin trimer C1 reactivates latent HIV as a triple combination therapy with kansui and JQ1 [J]. PLoS One, 2018.
[20] Bräunlich M, Slimestad R, Wangensteen H, et al. Extracts, anthocyanins and procyanidins from Aronia melanocarpa as radical scavengers and enzyme inhibitors [J]. Nutrients, 2013.
[21] Sun P, Wang T, Chen L, et al. Trimer procyanidin oligomers contribute to the protective effects of cinnamon extracts on pancreatic β-cells in vitro [J]. Acta Pharmacologica Sinica, 2016.
[22] Nakagawa Y,Ishimura K,Oya S,et al.Comparison of the sympathetic stimulatory abilities of B-type procyanidins based on induction of uncoupling protein-1 in brown adipose tissue (BAT) and increased plasma catecholamine (CA) in mice [J].PLoS One,2018
[23] Song J H, Lee H J, Kang K S.Procyanidin C1 Activates the Nrf2/HO-1 Signaling Pathway to Prevent Glutamate-Induced Apoptotic HT22 Cell Death [J]. International Journal of Molecular Sciences, 2019.